由稻瘟病菌(Magnaporthe oryzae)引起的稻瘟病是威胁全球水稻和小麦等禾本科粮食作物安全生产的最具破坏性的真菌病害之一。在侵染过程中,稻瘟病菌的孢子落在植物表面后萌发形成芽管,芽管感知植物表面的疏水性、硬度和化学信号(角质单体等),随后分化形成一种特化的侵染结构——附着胞。附着胞成熟后产生巨大的膨压,穿透植物角质层和细胞壁并形成侵染菌丝。角质单体诱导附着胞形成的过程与cAMP-PKA信号通路激活相关,然而介导该化学信号识别的特异性受体此前一直未被鉴定。
9月16日,生命科学学院卢建平教授联合浙江省农业科学院/湘湖实验室林福呈教授团队在PNAS在线发表了题为“Adenylate cyclase Mac1 functions as a cutin monomer receptor to drive appressorium development and infection in Magnaporthe oryzae”的研究论文。该研究确认腺苷酸环化酶Mac1是稻瘟病菌直接识别角质单体的受体,并揭示了一种基于Mac1亚细胞定位的空间调控机制。
研究团队前期发现附着胞阶段特异表达的膜蛋白Pams1的缺失突变体(Δpams1)在cAMP-PKA信号通路方面存在缺陷。该突变体的附着胞分化正常,但成熟过程受阻。该研究发现外源cAMP可以部分弥补Δpams1的附着胞成熟缺陷等表型,但cAMP-PKA信号通路的多种激活因子(激活态Ras2、Rgs1缺失、角质单体、Forskolin、IBMX、PdeH缺失以及疏水性有机表面)均不能弥补该突变体的附着胞成熟缺陷。研究确认角质单体以Mac1依赖性的方式激活cAMP-PKA通路;继而证实合成cAMP的腺苷酸环化酶Mac1是感知角质单体的受体。Mac1的N端144-536位氨基酸残基是其结合角质单体的区域,其中424-455位的32个氨基酸多肽是必需的,该片段中含有23个具有氢键形成能力的氨基酸。Pams1是Mac1被募集到成熟附着胞内体膜上必需的:在野生型附着胞中,Mac1定位于内体膜表面,而在Δpams1附着胞中,Mac1游离于细胞质中。把Mac1人为锚定到Δpams1内体膜表面,可以部分弥补该突变体的附着胞成熟缺陷以及对角质单体的响应缺陷,并部分恢复致病力。因此,Mac1定位于内体表面是其被角质单体激活所必需的:角质单体促进内体膜上的Mac1合成cAMP,而抑制细胞质中游离Mac1的合成能力。
简而言之,稻瘟病菌孢子萌发并分泌疏水蛋白和角质酶,角质酶降解水稻角质层释放角质单体。角质单体内化进入病菌细胞后,与定位于内体膜表面的Mac1结合,促进其合成cAMP,驱动附着胞形成和侵染过程(图1)。该病菌可以通过改变单个酶的亚细胞定位调整其对宿主特征性化学信号的响应方向,从而建立了一种研究病原真菌解码寄主来源化学信号的分子框架。
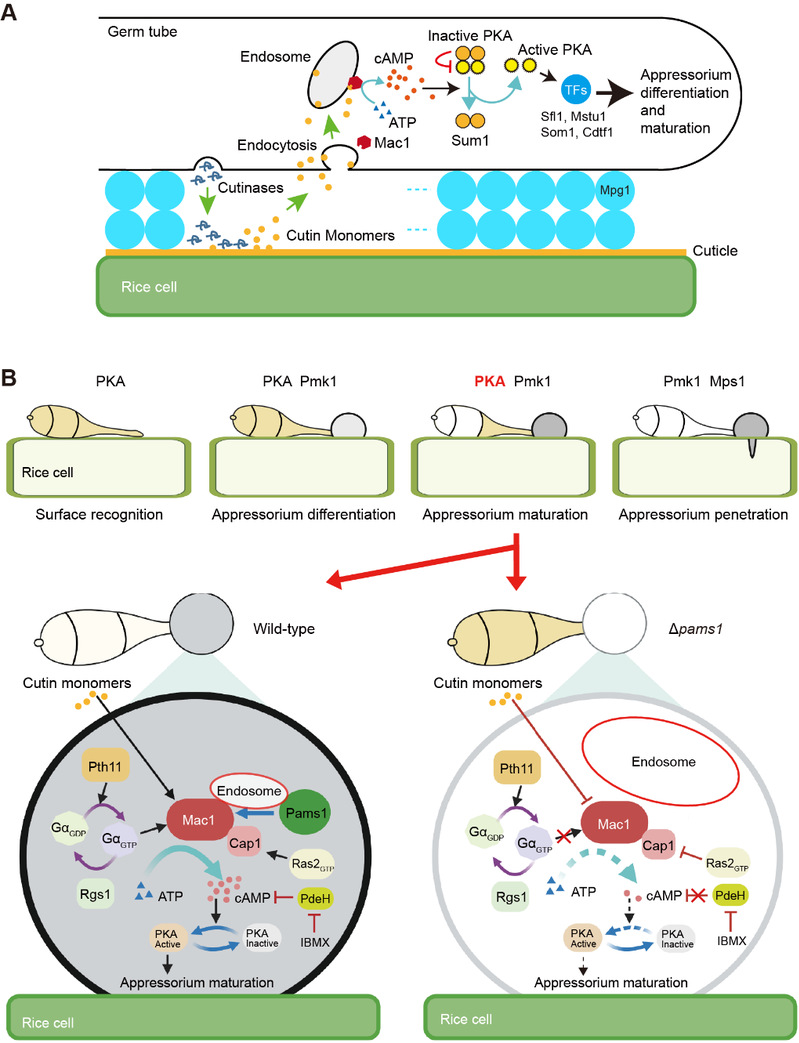
图1 腺苷酸环化酶Mac1和角质单体在稻瘟病菌侵染水稻过程中的作用机制
浙江大学生命科学学院博士研究生李辉、李岩和浙江省农业科学院王静博士为论文共同第一作者,卢建平教授和林福呈教授为共同通讯作者。浙江大学刘小红教授、浙江省农业科学院蔡莹莹博士、朱学明研究员、王教瑜研究员、湘湖实验室史学涛研究员等参与了该研究。该研究得到了国家重点研发计划和国家自然科学基金的资助。