细菌鞭毛马达是自然界最精密、最高效的纳米级分子机器之一,凭借它,细菌每秒能游出自身百倍的身长。这台微型发动机包含转子与定子两大核心模块:转子负责带动鞭毛丝旋转;而镶嵌在细胞膜上的定子,则是整部马达的“动力心脏”。早年,科学家曾误以为定子是固定不动的支架,“定子”之名由此而来。直到后来才发现,恰恰是定子利用细胞膜两侧的离子浓度梯度,驱动自身发生定向旋转,将化学能转化为机械能,进而产生扭矩拨动转子,最终撬动了整个鞭毛系统的高速运转与细菌的游动。
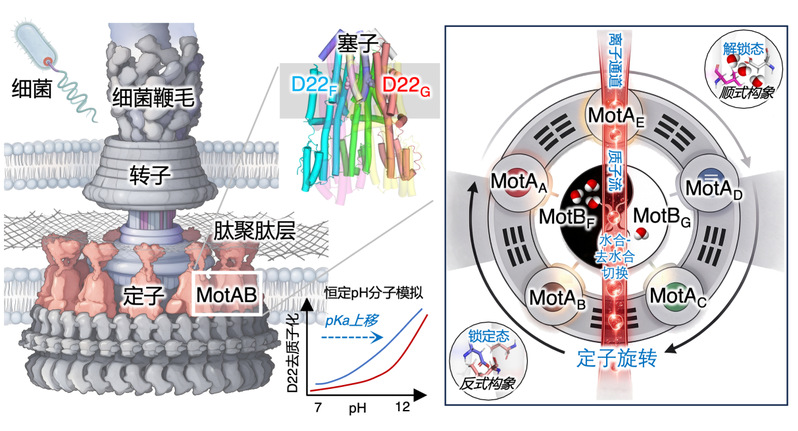
定子的原子结构是一个非对称的七聚体跨膜蛋白:五个MotA亚基围成外环,宛如“五行之阵”,是输出扭矩的齿轮;两个MotB亚基居于中心,恰似“阴阳两仪”,是控制质子流的开关。然而,微小的质子究竟如何驱动庞大的蛋白复合体定向旋转?质子梯度的化学能向机械能转换的微观动态过程是如何发生的?这一关键科学谜题长期悬而未决。
近日,生命科学学院王勇团队利用计算生物物理方法,从原子动态层面揭开了这一能量转换过程的微观面纱。相关成果发表于国际化学领域权威期刊《美国化学会志》(JACS)。
为了防止能量“空耗”,定子MotB亚基进化出了一个“塞子”结构域,在静息状态下卡住通道,防止离子泄漏并阻断旋转。过去人们以为,定子的启动逻辑很简单:只要“拔下塞子”,马达就会转动,但团队通过恒定pH分子动力学模拟与自由能微扰等计算手段,修正了这一认知:“拔塞子”仅仅是启动的必要非充分条件。想让马达真正转起来,MotB二聚体第22位点的两个天冬氨酸残基(D22)作为关键的质子载体,必须像“阴阳交替”一样,精准地来回切换其质子化、水合和构象状态。
研究发现,这两个D22残基所处的局部微环境迥然不同:F链上的D22被水分子环绕,更容易释放质子;而G链上的D22则被困在疏水口袋里,几乎无水,更易“抓住”质子。这种“一润一燥”的不对称水合模式,使得两个位点具有截然不同的质子亲和力,不仅打破了结构的对称性,更为定向旋转提供了内在的力学基础。
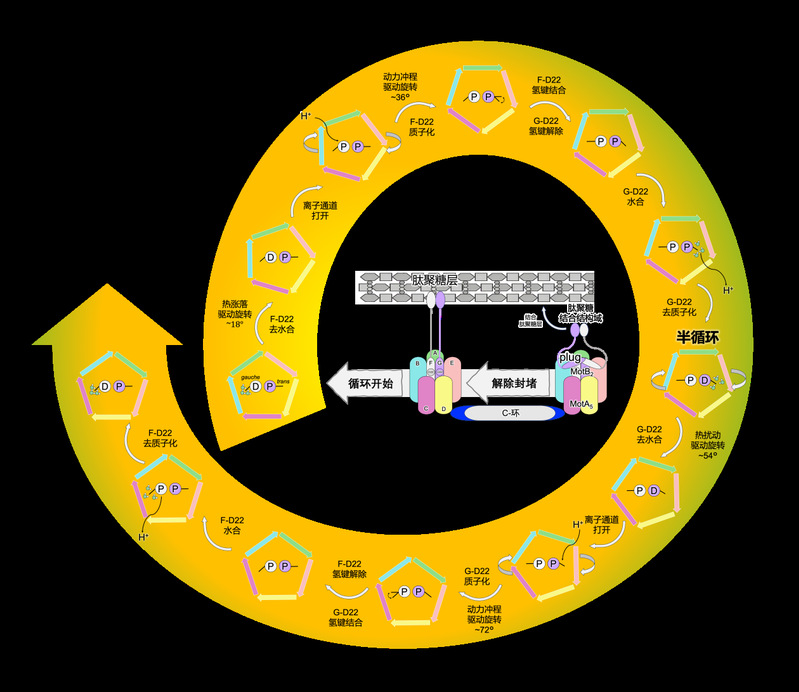
在完整的旋转循环中,当质子从通道流入,处于水合环境的D22率先捕获质子,其侧链随之发生构象切换,与外环MotA上的残基形成氢键。这就像齿轮精准卡入齿槽,推动外环的“齿轮”发生步进式旋转。随着蛋白的转动,原本水合的D22逐渐转向干燥的疏水侧并释放质子,而去水合的D22则转向亲水侧准备捕获下一个质子。二者微环境互换,角色交替,循环往复。就这样,质子流的化学能被一步步转化为机械旋转的动能,形成了一条“质子捕获—水合变化—构象切换—机械转动”的完整能量转换链条。
该项研究不仅解析了细菌运动的关键毒力机制,也为新型抗菌药物设计及仿生纳米机器人研发提供了理论参考。
该论文以生命科学学院硕士研究生罗健诚为第一作者,王勇研究员为最后通讯作者。集美大学计算机工程学院黄艳东副教授,哥本哈根大学胡海岱助理教授担任共同通讯作者。浙江大学航空航天学院修鹏副教授、集美大学计算机工程学院本科生蔡志涛、威斯康辛麦迪逊大学博士研究生劳一翀、浙江大学航空航天学院博士研究生时晨为共同作者。该研究得到国家自然科学基金的资助。